病毒
病毒是依赖宿主细胞完成增殖的感染性实体。它们没有独立的核糖体和完整代谢系统,离开细胞后不能自行复制;进入合适的宿主细胞后,病毒基因组可以利用或改造细胞过程,产生新的病毒颗粒。许多病毒不引起人类疾病,却会感染动物、植物、真菌、细菌、古菌或其他生物。
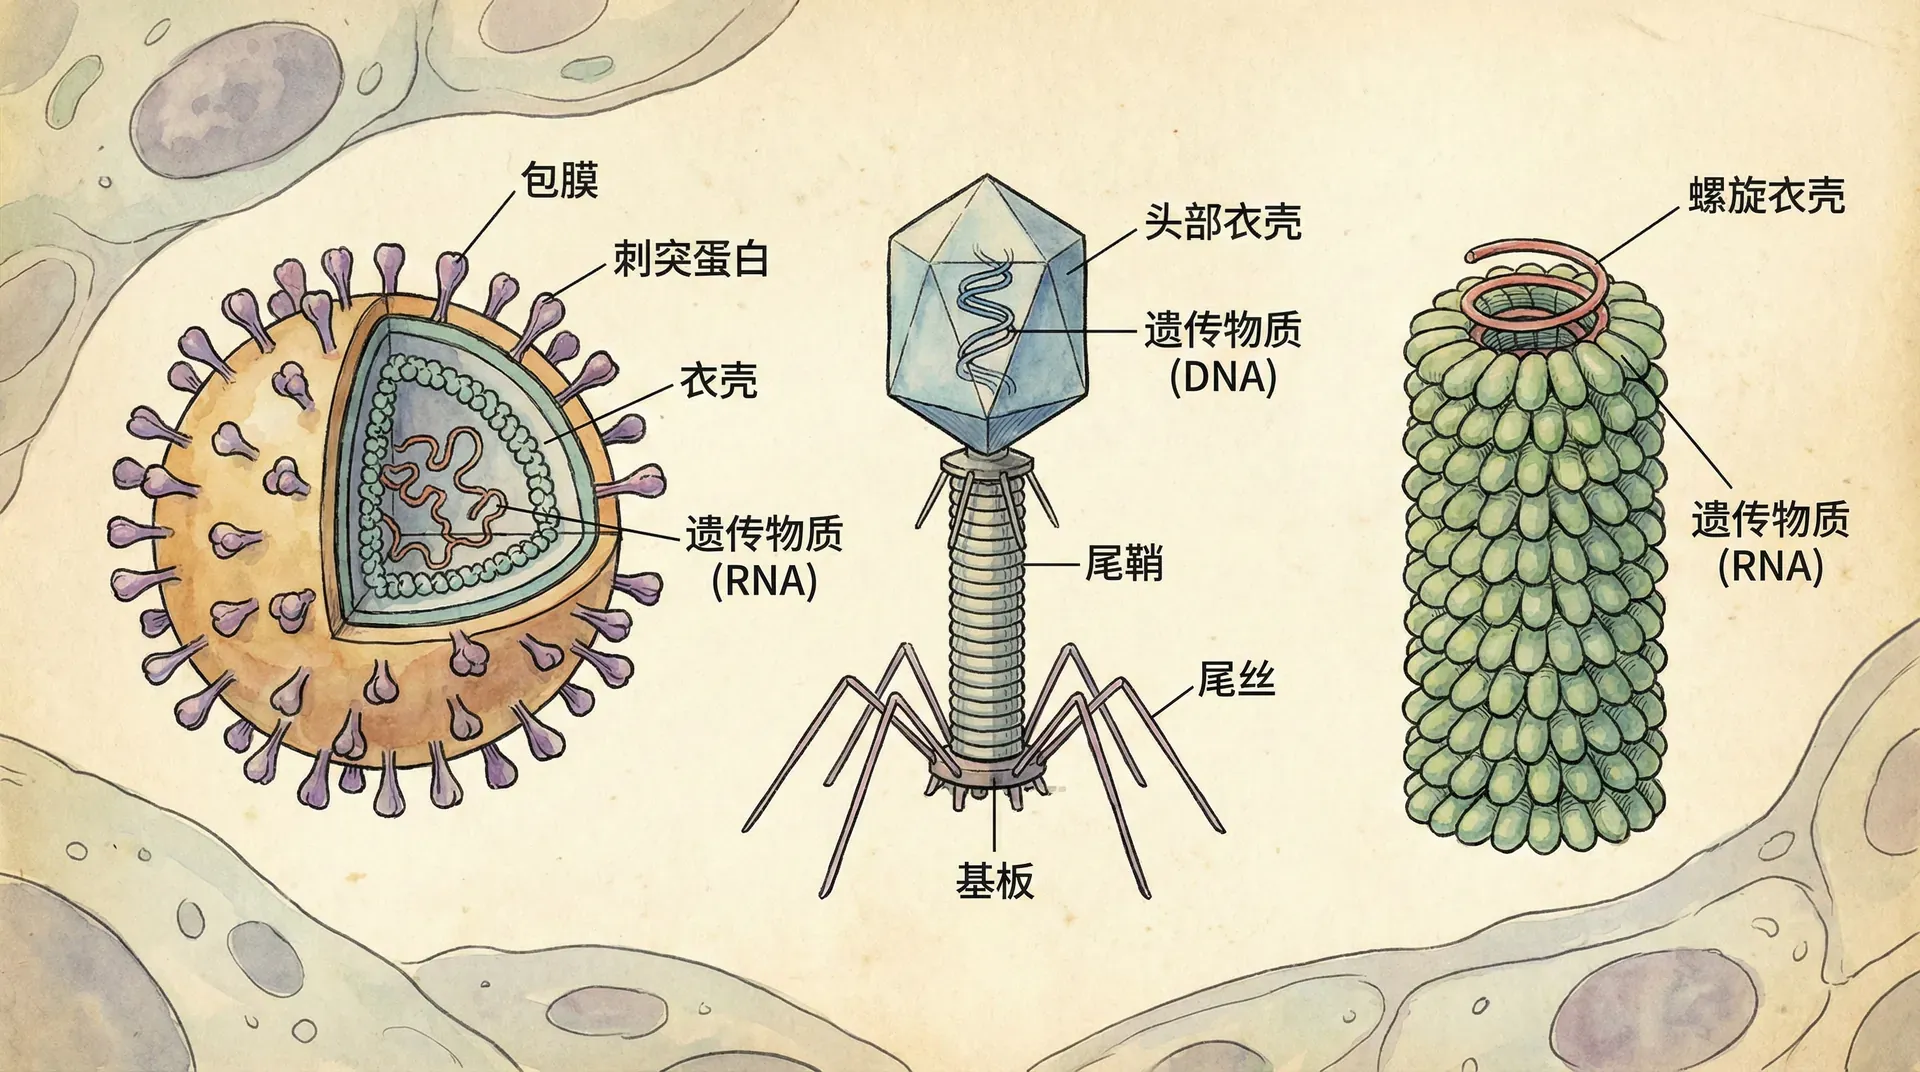
完整病毒颗粒至少包含核酸基因组和由病毒编码的蛋白质结构,许多病毒还具有脂质包膜或携带复制所需的酶。病毒大小跨越很大范围,大多数需要电子显微镜观察,部分巨型病毒颗粒则可接近细菌尺度。结构复杂程度不能只由直径判断。
病毒是否属于“生命”取决于采用的定义。它们拥有基因组、会变异并参与演化,却不能脱离宿主完成代谢和繁殖。与其强行归入“生物”或“非生物”,更有学习价值的做法是列出生命定义中的具体标准,再判断病毒满足哪些、缺少哪些。
病毒的基本结构
核酸基因组的多样性
我们通常认为基因是由双链DNA构成的,但病毒却打破了这个常规。根据病毒类型的不同,它们的基因组可能由双链DNA、单链DNA、双链RNA或单链RNA构成。病毒根据其核酸类型被分类为DNA病毒或RNA病毒。
病毒基因组可以是线性或环状、单段或分节,还可能具有不同的链性和极性。基因组大小从只有少量基因到编码上千种蛋白质相差悬殊;随着新病毒被发现,极值也会改变,因此分类时更应关注基因组组织和复制策略。
蛋白质外壳的结构
包围病毒基因组的蛋白质外壳被称为衣壳。根据病毒类型的不同,衣壳可能呈杆状、多面体状或更复杂的形状。衣壳由大量称为衣壳蛋白的蛋白质亚基构建而成,但衣壳中不同类型蛋白质的数量通常很少。
烟草花叶病毒的衣壳蛋白围绕RNA排列成螺旋结构。腺病毒衣壳整体具有二十面体对称性,由多种结构蛋白组成;“二十面体”描述的是几何对称性,并不意味着衣壳只含一种完全相同的蛋白质。
病毒包膜的特殊功能
一些病毒具有帮助它们感染宿主的附属结构。例如,膜状包膜包围着流感病毒和许多其他在动物中发现的病毒的衣壳。这些病毒包膜来源于宿主细胞的膜,含有宿主细胞的磷脂和膜蛋白。它们还含有病毒来源的蛋白质和糖蛋白。一些病毒在其衣壳内携带少量病毒酶分子。
最复杂的衣壳见于感染细菌的病毒,称为噬菌体或简称噬菌体。最早研究的噬菌体包括7个感染大肠杆菌的噬菌体。这7个噬菌体按发现顺序被命名为1型(T1)、2型(T2)等等。三个“T偶”噬菌体(T2、T4和T6)在结构上非常相似。它们的衣壳具有包围其DNA的细长二十面体头部。头部连接着一个蛋白质尾部,噬菌体通过尾部纤维附着到细菌细胞上。
病毒如何复制

病毒感染的基本过程
病毒本身缺乏制造蛋白质的代谢酶和设备,如核糖体。它们是专性细胞内寄生生物,换句话说,它们只能在宿主细胞内复制。可以说,孤立状态下的病毒只是一组打包好的基因,正在从一个宿主细胞转运到另一个宿主细胞的途中。
一种病毒能够感染哪些宿主和组织,称为宿主范围与组织嗜性。病毒表面蛋白和细胞受体的相互作用是第一道限制,进入细胞后的复制因子、先天免疫、温度和组织环境也会决定感染能否继续。
病毒受体通常原本参与细胞自身的黏附、运输或信号过程。某些虫媒病毒可以在节肢动物媒介和脊椎动物宿主中复制,另一些病毒只在少数近缘物种或特定细胞中完成复制。检测到病毒核酸或短暂进入细胞,并不一定等于形成有效传播链。
麻疹病毒的自然宿主主要是人类。呼吸道病毒也并非都局限在同一部位:不同病毒可感染鼻腔、气道或肺部的不同细胞。HIV进入细胞需要CD4及相应共受体,所以主要感染特定免疫细胞,但其宿主范围仍由受体之外的多种因素共同限制。
病毒复制的一般特征
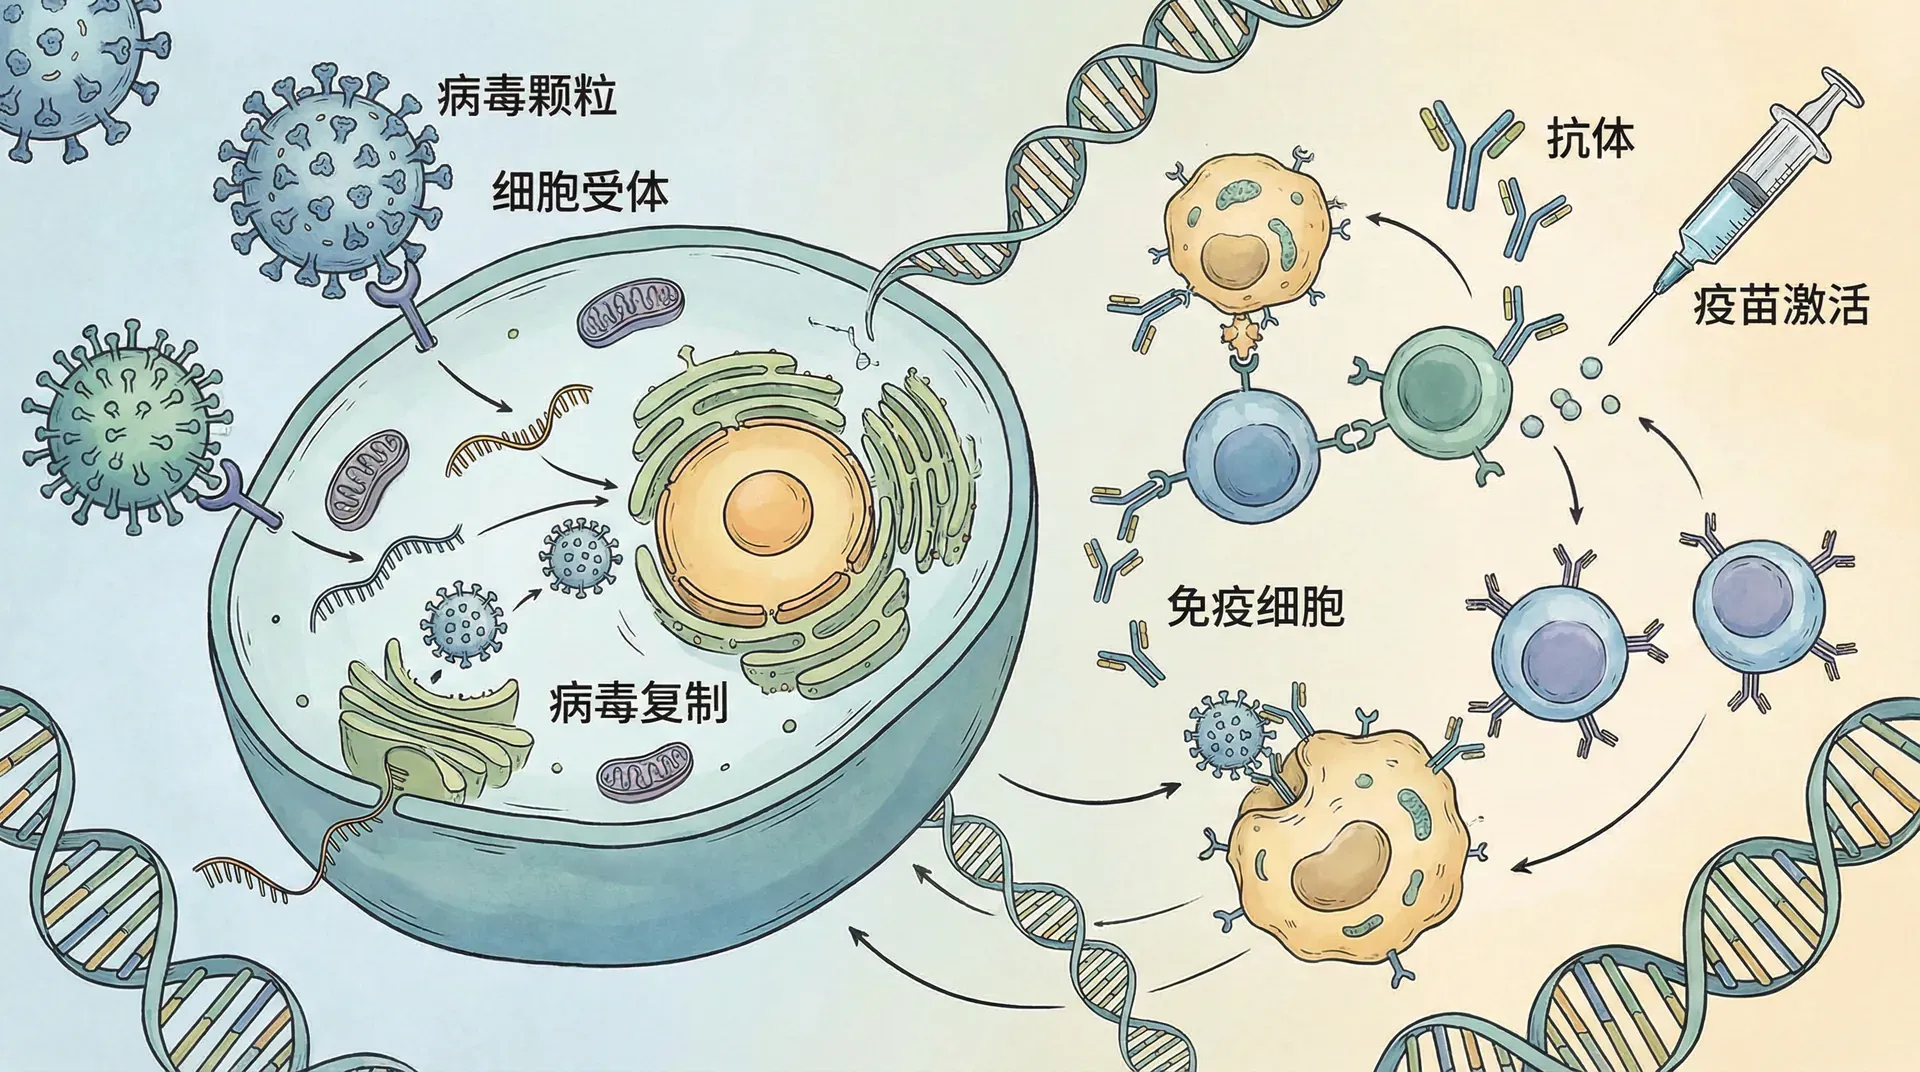
病毒感染始于病毒与宿主细胞结合,病毒基因组进入细胞内部。基因组进入的机制取决于病毒类型和宿主细胞类型。例如,T偶噬菌体使用其复杂的尾部装置将DNA注入细菌。其他病毒通过内吞作用被摄取,对于包膜病毒,则是通过病毒包膜与宿主细胞质膜融合。
基因组进入合适区室后,病毒基因产物会改变细胞的转录、翻译、膜运输或免疫反应。所有病毒都依赖宿主核糖体合成蛋白质,但不同病毒对宿主或自身编码的核酸聚合酶、加工酶和能量代谢的依赖程度并不相同。
部分小型DNA病毒主要利用宿主DNA聚合酶,许多大型DNA病毒则编码自己的复制酶。RNA病毒需要RNA依赖的RNA聚合酶,逆转录病毒还要先用逆转录酶生成DNA中间体。基因组类型与复制位置共同决定病毒必须携带或编码哪些酶。
一些较简单的病毒组分能在适当条件下自组装,烟草花叶病毒是经典例子。复杂病毒的装配则需要分步加工、支架蛋白、分子马达或宿主膜系统,不能把所有病毒的形成都概括为完全自发混合。
最简单类型的病毒复制循环以成百上千的病毒从被感染的宿主细胞中释放出来而结束,这个过程往往损坏或破坏细胞。这种细胞损伤和死亡,以及机体对这种破坏的反应,造成了与病毒感染相关的许多症状。从细胞中释放出来的病毒后代有可能感染其他细胞,传播病毒感染。
噬菌体的复制机制

噬菌体是所有病毒中了解最深入的,尽管其中一些也是最复杂的。对噬菌体的研究导致发现一些双链DNA病毒可以通过两种不同的机制复制:裂解循环和溶原循环。
裂解循环
以宿主细胞死亡为终结的噬菌体复制循环被称为裂解循环。这个术语指的是感染的最后阶段,在此期间细菌裂解(破裂)并释放在细胞内产生的噬菌体。每个这样的噬菌体都能感染健康细胞,几个连续的裂解循环可以在短短几个小时内摧毁整个细菌群体。只通过裂解循环复制的噬菌体是毒性噬菌体。
典型毒性噬菌体T4的裂解循环可分为以下步骤。表中时间是适宜实验条件下的近似示意,会随宿主状态、温度和培养条件改变:
噬菌体T4有近300个基因,这些基因使用宿主细胞的机器进行转录和翻译。病毒DNA进入宿主细胞后翻译的首批噬菌体基因之一编码一种降解宿主细胞DNA的酶;噬菌体DNA受到保护不被分解,因为它含有一种修饰形式的胞嘧啶,不被噬菌体酶识别。整个裂解循环,从噬菌体首次接触细胞表面到细胞裂解,在37°C时仅需20-30分钟。
溶原循环
许多噬菌体不是裂解宿主细胞,而是与它们共存于一种称为溶原性的状态。与杀死宿主细胞的裂解循环相比,溶原循环允许噬菌体基因组复制而不破坏宿主。能够在细菌内使用两种复制模式的噬菌体称为温和噬菌体。
广泛用于生物学研究的温和噬菌体叫做λ(lambda,希腊字母λ)。噬菌体λ类似于T4,但其尾部只有一根短尾纤维。大肠杆菌细胞被噬菌体λ感染始于噬菌体与细胞表面结合并注入其线性DNA基因组。在宿主内,λ DNA分子形成环形。接下来发生的事情取决于复制模式:裂解循环还是溶原循环。
在溶原循环中,λ DNA分子通过病毒蛋白质整合到大肠杆菌染色体的特定位点,这些蛋白质打断两个环形DNA分子并将它们相互连接。当以这种方式整合到细菌染色体中时,病毒DNA被称为前噬菌体。
前噬菌体的一个基因编码一种蛋白质,阻止大多数其他前噬菌体基因的转录。因此,噬菌体基因组在细菌内大多保持沉默。每当大肠杆菌细胞准备分裂时,它都会复制噬菌体DNA以及自己的染色体,这样每个子细胞都继承一个前噬菌体。
单个被感染的细胞可以迅速产生携带前噬菌体形式病毒的大量细菌群体。这种机制使病毒能够传播而不杀死它们依赖的宿主细胞。
溶原性一词意味着前噬菌体能够产生裂解其宿主细胞的活性噬菌体。当λ基因组(或另一个温和噬菌体的基因组)被诱导离开细菌染色体并启动裂解循环时,就会发生这种情况。某种化学物质或高能辐射等环境信号通常会触发从溶原模式到裂解模式的转换。
除了编码防止转录的病毒蛋白质的基因外,在溶原期间还可能表达其他一些前噬菌体基因。这些基因的表达可能改变宿主的表型,这种现象在医学上具有重要意义。例如,引起人类白喉、肉毒杆菌中毒和猩红热疾病的三种细菌物种,如果没有某些前噬菌体基因导致宿主细菌制造毒素,对人类的危害就不会那么大。
细菌对噬菌体的防御机制

噬菌体没有消灭所有细菌,是因为细菌防御、空间隔离、宿主生理状态和噬菌体宿主范围共同限制感染;部分噬菌体进入温和状态也会延迟宿主裂解。细菌与噬菌体由此形成持续变化的生态与演化关系。
细菌对抗噬菌体的主要防御机制包括:
-
受体突变:自然选择会保留那些表面蛋白发生突变、不再被特定噬菌体识别为受体的细菌。
-
限制-修饰系统
- 当噬菌体DNA进入细菌时,细菌可以通过限制性酶将其识别为外来DNA并进行切割。
- 这些限制性酶之所以得名,是因为它们可以限制噬菌体在细菌内的复制。
- 细菌自身的DNA会以甲基化的方式被修饰,以防止其被本身的限制性酶降解。
-
CRISPR-Cas系统
- 这类系统存在于许多细菌和古菌中,但并非所有物种或菌株都具有。
- 科学家在很多原核生物基因组中发现了成簇规律间隔短回文重复序列(CRISPR)。
- 这些回文重复序列之间夹着不同的“间隔DNA”,CRISPR-Cas系统能帮助细菌识别并摧毁噬菌体DNA。
起初,科学家认为间隔DNA序列是随机和无意义的,但几个研究小组的分析表明,每个间隔序列都对应于曾经感染过该细胞的特定噬菌体的DNA。进一步的研究表明,特定的核酸酶蛋白质与CRISPR区域相互作用。这些核酸酶,称为Cas(CRISPR相关)蛋白质,能够识别和切割噬菌体DNA,从而保护细菌免受噬菌体感染。
在具备适应性获取功能的CRISPR-Cas系统中,部分入侵核酸片段可作为新的间隔序列插入CRISPR阵列。阵列随后转录并加工为向导RNA,使相关Cas蛋白识别具有互补序列及合适邻近信号的入侵核酸;病毒变异或抗CRISPR蛋白也可能使防御失效。
这些RNA被切成片段,然后被Cas蛋白结合。Cas蛋白使用一部分与噬菌体相关的RNA作为归巢装置来识别入侵的噬菌体DNA并将其切割,导致其被破坏。
正如自然选择偏爱那些受体因突变而改变或具有能切割噬菌体DNA的酶的细菌一样,它也偏爱那些能够结合到改变的受体或对酶具有抗性的噬菌体突变体。因此,细菌-噬菌体关系处于不断的进化变化中。
病毒性疾病及其防控
动物病毒的感染机制
许多常见呼吸道疾病由病毒引起,但相似症状也可能来自不同病原或非感染因素。动物病毒都依赖宿主细胞增殖,其感染途径会随基因组类型、是否具有包膜、受体和复制位置而变化。
许多动物RNA病毒具有包膜,如流感病毒和冠状病毒;另一些RNA病毒没有包膜,如脊髓灰质炎病毒、诺如病毒和轮状病毒。DNA病毒中也同时存在有包膜与无包膜类型。
病毒感染可直接破坏细胞,也可改变细胞功能、触发炎症或引起免疫介导的组织损伤。症状的严重程度取决于感染部位、病毒复制、宿主免疫反应、基础健康状态和组织修复能力等多种因素。
多数普通感冒会自行缓解,既与免疫系统控制感染有关,也与呼吸道上皮修复有关。脊髓灰质炎病毒在少数感染者中侵害运动神经元,可造成长期瘫痪。发热和肌痛等症状常有免疫介质参与,但这不排除病毒对组织的直接损伤。
疫苗
疫苗通过呈递抗原或让机体短暂产生抗原,诱导免疫记忆,从而降低以后感染、发病或重症的风险。疫苗平台包括减毒、灭活、蛋白亚单位、病毒载体和核酸等,并不都能概括为“病原体的无害衍生物”。
天花这种曾经在世界许多地区造成毁灭性破坏的病毒性疾病,通过世界卫生组织开展的疫苗接种计划得以根除。天花病毒极窄的宿主范围——它只感染人类——是这一计划成功的关键因素。类似的全球疫苗接种运动目前正在进行,以根除脊髓灰质炎和麻疹。针对风疹、腮腺炎、乙型肝炎和许多其他病毒性疾病也有有效的疫苗。
评价疫苗需要区分免疫原性、对感染或重症的保护效果、安全性和保护持续时间,并说明研究人群、流行株与观察时间。接种策略还要结合疾病传播特点和监测数据调整。
抗生素针对细菌结构或过程,不能治疗病毒感染,但医生可能在明确或高度怀疑继发细菌感染时使用。部分病毒感染有特异性抗病毒药物,其他情况则以支持治疗和监测并发症为主。
抗病毒药物可以靶向病毒聚合酶、蛋白酶、整合酶或进入和释放过程,也可能靶向宿主依赖因子。阿昔洛韦经感染细胞中的病毒酶优先活化后抑制疱疹病毒DNA聚合酶;这种选择性是相对的,药物仍需按适应证和个体情况使用。
新发病毒的威胁与应对
“新发病毒”通常指新近在人群中出现,或已存在但发病率、地理范围明显增加的病毒。HIV在20世纪80年代初被识别,并不意味着病毒当时才产生;保存样本和系统发育分析把人畜共患传播与更早的传播历史联系起来。
SARS、H7N9禽流感和COVID-19说明,应对新发病毒需要病例监测、实验室检测、接触与传播研究、医疗资源和风险沟通协同工作。不同病原的传播方式和严重程度不同,不能用一个“控制用时”直接比较防控能力。
这些病毒如何突然出现在人类社会中,引发以往罕见甚至未知的疾病?主要有以下三个过程促成病毒性疾病的出现:
-
现有病毒的突变
- 许多RNA病毒的复制错误率较高;冠状病毒等具有一定校对能力,因此不同RNA病毒不能一概而论。
- 变异可改变抗原性、复制或传播特征,但大多数突变是中性或不利的。既往感染后的保护程度取决于病毒变化、免疫记忆和时间间隔。
- 例如,季节性流感流行就是由遗传上发生明显变化的新流感病毒毒株引起的,人们普遍对这些新毒株缺乏免疫力。
-
病毒从小的、孤立的人群中传播并扩展
- 病毒性疾病有时原本只局限于小范围内,后因传播路径扩展而成为全球性问题。
- 以AIDS(艾滋病)为例,几十年来它并未引起广泛关注,直到后来开始在全球暴发。
- 人口流动、医疗操作、性接触和共用注射器等途径会影响传播网络。分析时应使用具体行为和防护条件,避免把感染简单归因于某类人群。
-
病毒从其他动物传播到人类
- 许多新发人类传染病涉及动物来源,但比例会随疾病定义、时间范围和数据集而变化。
- 能携带并传播特定病毒但自身一般不受影响的动物被称为该病毒的“天然宿主库”。
- 例如,2009年流感大流行的H1N1病毒很可能是由猪传播给人类,因此早期称为“猪流感”。
甲型流感病毒可感染多种鸟类和哺乳动物,基因组分节使不同病毒共同感染细胞时可能发生基因片段重配。乙型流感主要在人类中传播,也可感染少数其他宿主;丙型流感通常引起较轻疾病。研究跨物种事件时,要区分动物偶发感染、人际传播和持续传播链。
气温和降水会影响蚊媒的生存、繁殖和病毒发育,土地利用、旅行、城市化和防蚊措施也会改变传播风险。把某次地区暴发归因于气候变化,需要长期气象、媒介分布和病例数据共同支持。
植物病毒与农业安全
植物病毒的危害与传播
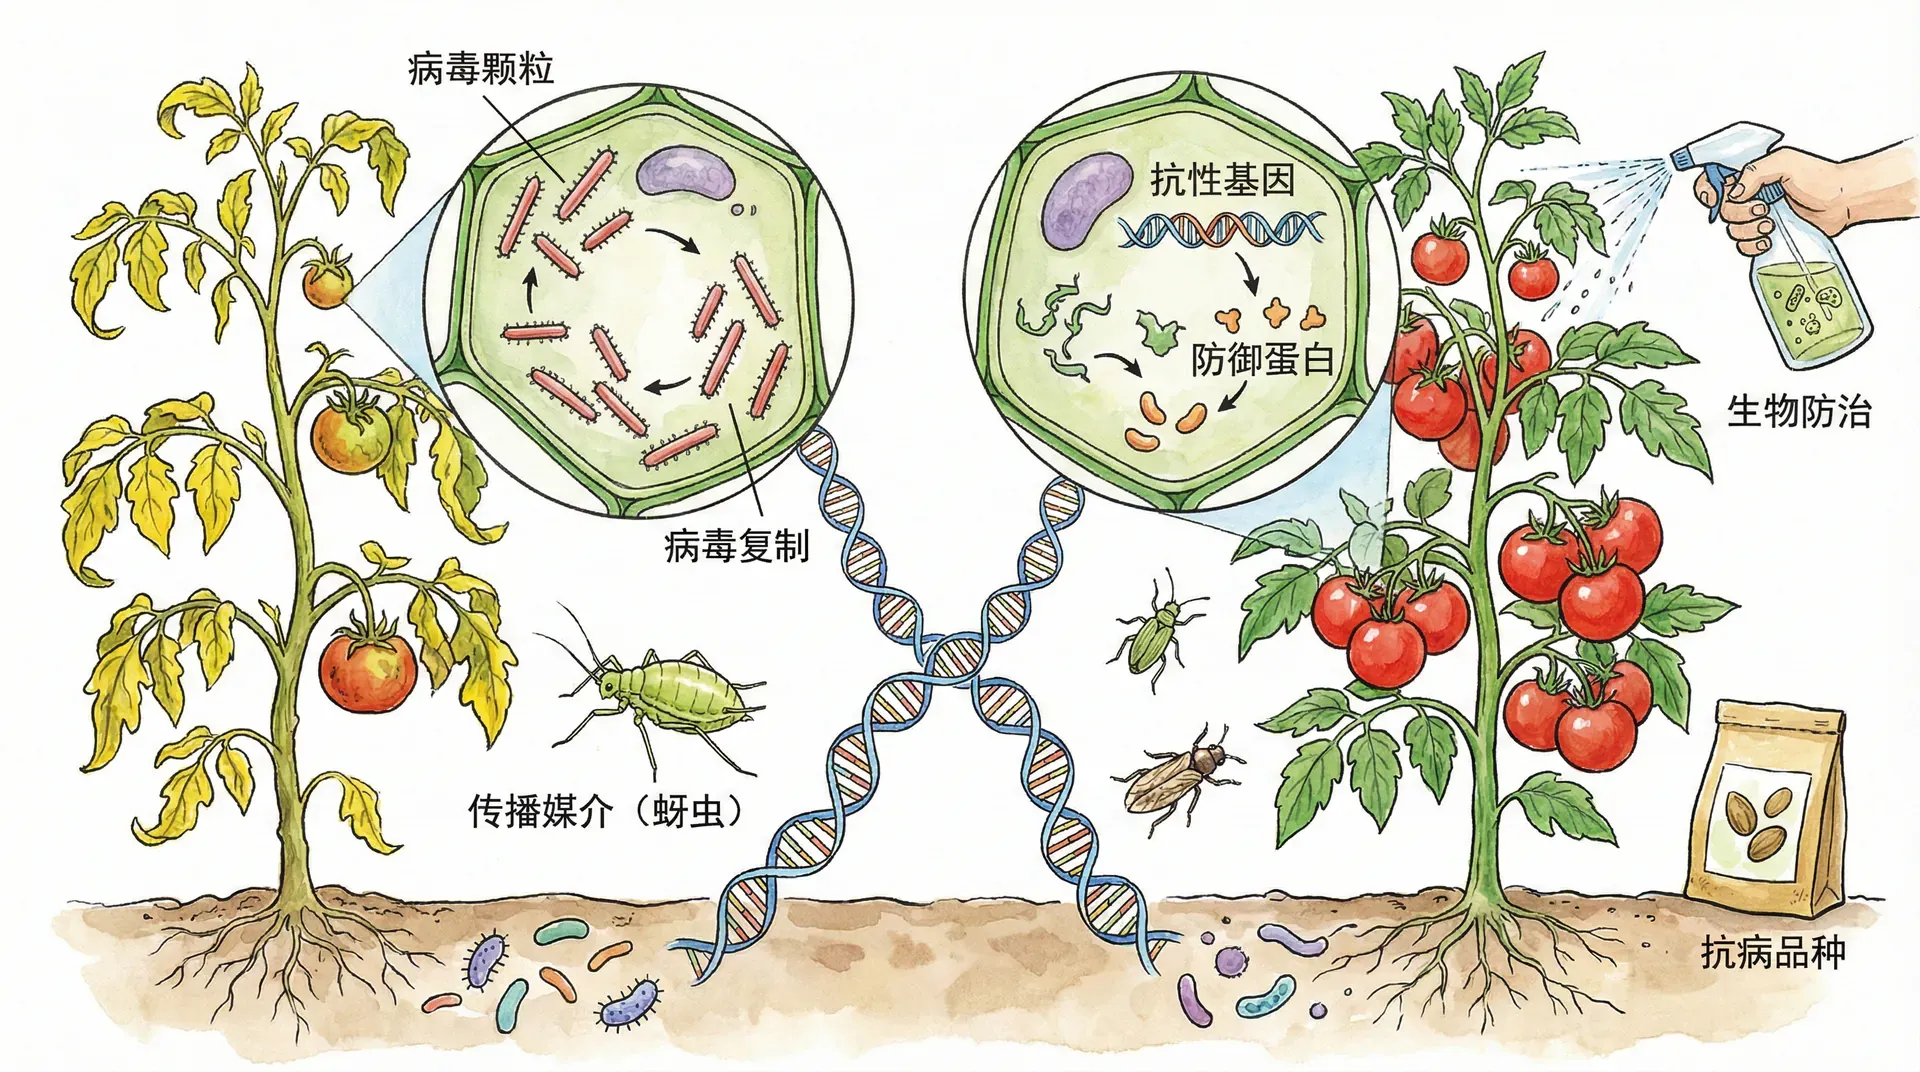
植物病毒可造成花叶、斑驳、黄化、矮化和果实畸形等症状,也可能形成无明显症状的感染。症状和产量损失会随病毒、作物品种、感染时期、环境与混合感染而变化,仅凭叶片外观不能确定病原。
水稻、番茄和马铃薯等作物都可能遭受病毒病害。某地某年的减产幅度不能直接套用到其他地区;评估损失需要设置健康对照,记录品种、媒介密度、感染时期和其他病虫害,并区分相关性与因果作用。
植物病毒具有与动物病毒相同的基本结构和复制模式。迄今为止发现的大多数植物病毒,包括烟草花叶病毒(TMV),都具有RNA基因组。许多植物病毒像TMV一样具有螺旋衣壳,而其他植物病毒具有二十面体衣壳。
植物的病毒性疾病通过两个主要途径传播。第一个途径称为水平传播,植物从病毒的外部来源受到感染。由于入侵病毒必须绕过植物细胞的外层保护层(表皮),如果植物受到风、外伤或食草动物的损伤,就更容易受到病毒感染。
食草动物,特别是昆虫,构成双重威胁,因为它们也可以充当病毒载体,将疾病从植物传播到植物。此外,农民和园丁可能在修剪剪刀和其他工具上无意中传播植物病毒。病毒感染的另一个途径是垂直传播,其中植物从亲本那里继承病毒感染。垂直传播可以在无性繁殖(例如,通过插条)或通过受感染种子的有性繁殖中发生。
一旦病毒进入植物细胞并开始复制,病毒基因组和相关蛋白质就可以通过胞间连丝在整个植物中传播,胞间连丝是穿透相邻植物细胞壁之间的胞质连接。病毒大分子从细胞到细胞的通过由病毒编码的蛋白质促进,这些蛋白质导致胞间连丝扩大。
科学家还没有为大多数植物病毒疾病设计出治疗方法。因此,研究工作主要集中在减少此类疾病的传播和培育抗性作物品种上。
植物病毒的综合防控
植物病毒通常缺少可直接用于田间治愈感染植株的药物,因此防控强调健康种苗、抗病品种、媒介与杂草宿主管理、工具消毒和监测预警。单项措施的效果可能有限,组合策略还应根据病毒的传播方式调整。
病毒的进化意义
病毒离开宿主后不能独立繁殖或维持完整代谢,却携带可复制和演化的遗传信息。病毒与宿主之间的选择压力会推动受体、免疫、防御和逃逸机制共同变化,病毒也会通过基因转移影响宿主基因组与生态系统。
病毒起源尚无统一解释。逃逸假说认为移动遗传元件逐渐获得细胞间传播能力;退化假说认为某些病毒来自高度简化的细胞寄生者;“病毒优先”或共演化模型则把部分病毒谱系追溯到很早的复制系统。病毒之间缺乏所有类群共有的单一基因,不同病毒群可能具有不同起源。
理解病毒时,可以沿着“基因组类型—进入方式—复制所需酶—装配与释放—宿主反应”分析具体案例。这个框架既能解释抗病毒药物为何具有选择性,也能帮助判断动物病毒、噬菌体和植物病毒之间哪些规律可以类比,哪些必须分别讨论。